Metabolismo: enzimas y energía

Roger Iziga-Goicochea & Hozmara Rocío Torres Acosta

Células y Flujo de energía
La energía es la capacidad de realizar trabajo; las células continuamente usan energía para desarrollarse, crecer, repararse, reproducirse, etc.
La energía cinética es la energía del movimiento; todos los objetos que se mueven tienen energía cinética.
La energía potencial es energía almacenada.
Los alimentos almacenan energía química; ésta contiene energía potencial.
La energía química se puede convertir en energía mecánica, por ejemplo, como en el caso del movimiento muscular.

Las dos leyes de la termodinámica

La primera ley de la termodinámica (también denominada ley de la conservación de la energía) señala que la energía no puede crearse ni destruirse, pero puede cambiar de una forma a otra.
En un ecosistema, la energía solar es convertida en energía química por el proceso de fotosíntesis; una parte de la energía química que la planta almacena es convertida en energía química en los animales, la que a su vez se puede convertir en energía mecánica o puede servir para generar calor.
Ni las plantas ni los animales crean energía, ellos convierten la energía de una forma a otra.
De la misma manera, la energía no se destruye; una parte se puede convertir en calor que se disipa en el ambiente.

Segunda ley de la termodinámica

La energía no puede cambiar de una forma a otra sin una perdida de energía útil.
El calor es una forma de energía que se disipa en el ambiente; el calor no puede ser convertido en otra forma de energía.

Células y entropía

Cada transformación de la energía hace que el universo esté menos organizado y mas desordenado; entropía es el término utilizado para indicar la cantidad relativa de desorganización que existe.
Cuando los iones se distribuyen al azar a través de una membrana, la entropía se incrementa.
Las formas de energía utilizable y organizada (como en caso de la glucosa) tienen relativamente una baja entropía; las formas menos estables y desorganizadas tienen relativamente una alta entropía.
La conversión de las diferentes formas de energía genera calor, debido a esto, la entropía del universo siempre se esta incrementando.
Los organismos vivos dependen de un suministro constante de energía que proviene del sol, debido a que el destino final de la energía solar en la biosfera es su disipación como calor; la célula es almacén temporal de un flujo constante de energía.

Reacciones Metabólicas y transformación de la energía
El Metabolismo es definido como la suma de todas las reacciones bioquímicas en una célula.
En la reacción A + B = C + D, A y B son denominados reactantes, mientras que C y D son los productos.
La energía libre (G) es la cantidad de energía que esta libre para realizar trabajo después de una reacción química.
El cambio en la energía libre es indicado con el símbolo DG; un DG negativo significa que los productos tienen menos energía libre que los reactantes; la reacción ocurre espontáneamente.
Las reacciones exergónicas tienen un DG negativo y la energía es liberada.
Las reacciones endergónicas tienen un DG positivo, los productos tienen mas energía que los reactantes; dichas reacciones pueden ocurrir solamente con un ingreso o suministro de energía.

ATP: Energía para las Células

La adenosina trifosfato (ATP) es la moneda energética de las células; cuando las células necesitan energía, gastan ATP.
El ATP es un transportador de energía para muchos tipos diferentes de reacciones.
Cuando el ATP es convertido en ADP + Pi, la energía liberada es suficiente para que las reacciones biológicas sucedan con poco desperdicio o mal uso de energía.
La ruptura del ATP esta acoplada a las reacciones endergónicas de tal manera que se minimizan las perdidas de energía.
El ATP es un nucleótido compuesto de una base adenina, un azúcar de 5 carbonos denominado ribosa y tres grupos fosfatos.
Cuando un grupo fosfato es removido, aproximadamente 7.3 Kcal. de energía es liberada por mol.

Reacciones Acopladas

Una reacción acoplada ocurre cuando la energía liberada por una reacción exergónica es utilizada para llevar a cabo una reacción endergónica.
La ruptura del ATP esta frecuentemente acoplada a las reacciones celulares que requieren energía.
El suministro de ATP se mantiene por la degradación de glucosa durante la respiración celular.
Solamente el 39% de la energía química almacenada en la glucosa es transferida al ATP; el 61% restante es perdido en forma de calor.
El ATP puede cumplir tres funciones.
Trabajo químico: el ATP suministra la energía para la síntesis de moléculas que sirven para la construcción de la célula.
Trabajo para el transporte: El ATP suministra energía para mover sustancias a través de la membrana celular.
Trabajo mecánico: el ATP suministra energía para llevar a cabo procesos mecánicos (como la contracción muscular, movimiento ciliar, etc.).

Vías metabólicas y enzimas

Una vía metabólica es una secuencia ordenada de reacciones acopladas; cada paso es catalizado por una enzima específica.
Las vías metabólicas se inician con un reactante particular, terminan con productos finales y pueden tener pasos intermedios.
En muchas instancias, una vía se continúa con la siguiente, debido a que las vías frecuentemente tienen una o mas moléculas en común, una vía puede conducir al desarrollo de otras vías metabólicas diferentes.
La energía metabólica es capturada más fácilmente si es liberada en pequeñas proporciones.
Un reactante es una sustancia que es convertida en un producto en una reacción; frecuentemente muchos pasos intermedios ocurren previamente.
Cada paso en una serie de reacciones químicas requiere de una enzima específica.
Las enzimas son catalizadores que aceleran la velocidad de las reacciones sin que la enzima sea afectada por la reacción.
Cada enzima es específica en su acción y cataliza solamente una reacción o un tipo de reacción.
Un substrato es un reactante para una reacción enzimática.

Energía de activación

Las moléculas frecuentemente no reaccionan unas con otras a menos que sean activadas de alguna manera.
Para que las reacciones metabólicas ocurran en la célula, una enzima usualmente debe estar presente.
La energía de activación (Ea) es la energía que se requiere para provocar que las moléculas reaccionen; sin una enzima, esta energía puede ser proporcionada por el calor, el cual causa un incremento del número de colisiones moleculares.

El complejo enzima-substrato

Las enzimas aceleran las reacciones químicas disminuyendo la energía de activación (Ea), formando un complejo con sus substratos en el denominado sitio activo.
Un sitio activo es una pequeña región en la superficie de la enzima en donde el substrato se une.
Cuando un substrato se une con una enzima, el sitio activo sufre un ligero cambio en su forma que facilita la reacción. Este proceso se denomina modelo del encaje inducido de la catálisis enzimática.
En una célula, solamente una pequeña cantidad de la enzima se requiere debido a que las enzimas no son consumidas o destruidas durante la catálisis.
Algunas enzimas (como la tripsina) participan en estas reacciones.
Un reactante en particular puede producir más de un tipo de productos.
La presencia o ausencia de una enzima determina que reacciones se llevan a cabo.
Si los reactantes pueden formar más de un producto, las enzimas presentes determinan que producto es formado.
Cada reacción celular requiere sus enzimas específicas; las enzimas son algunas veces denominadas por sus substratos añadiendo al final la terminación asa (por ejemplo lipasa).

Factores que afectan la actividad enzimática

La concentración del substrato
Debido a que las moléculas deben encontrarse para reaccionar, la actividad enzimática se incrementa si la concentración del substrato se incrementa; mientras más moléculas del substrato llenen el sitio activo, más producto es producido por unidad de tiempo.

La temperatura y pH
A medida que la temperatura aumenta, la actividad enzimática se incrementa debido a que hay más colisiones enzima-substrato.
La actividad enzimática declina rápidamente cuando la enzima es desnaturalizada a un cierto nivel de temperatura, debido a un cambio en la forma de la enzima.
Cada enzima tiene un pH óptimo al cual la velocidad de la reacción es óptima.
Un cambio en el pH puede alterar la ionización de los grupos R de los aminoácidos en la enzima, alterando la actividad de la enzima.

Concentración de la enzima
La cantidad de enzima activa puede regular la velocidad de la actividad enzimática.
Las células pueden activar genes específicos cuando ciertas enzimas se necesitan.

Cofactores enzimáticas
Muchas enzimas requieren iones inorgánicos, o cofactores no proteicos para funcionar.
Los cofactores inorgánicos son los iones metálicos.
Una coenzima es un cofactor orgánico, el cual ayuda a la enzima (puede contribuir con átomos para la reacción).
Las vitaminas son moléculas orgánicas que se requieren en pequeñas cantidades para la síntesis de coenzimas; ellas llegan a formar parte de la estructura molecular de las coenzimas; la deficiencia de vitaminas provoca una carencia de una coenzima específica y una alteración de la acción enzimática.
La fosforilación de las enzimas ocurre cuando una señal proteica activa las proteínas kinasas, las que a su vez activan enzimas específicas; algunas hormonas usan este mecanismo de activación.
La inhibición enzimática ocurre cuando una sustancia (denominada inhibidor) se une a una enzima y disminuye su actividad; normalmente la inhibición enzimática es reversible.
En la inhibición competitiva, el sustrato y el inhibidor son capaces de unirse al sitio activo de la enzima.
En la inhibición no competitiva, el inhibidor se une a la enzima en un lugar diferente al del sitio activo (denominado sitio alostérico), cambiando la forma de la enzima y hacienda que esta sea incapaz de unirse con su sustrato.
La inhibición competitiva y no competitiva son ejemplos de inhibición por retroalimentación o feedback.
En la inhibición irreversible, el inhibidor inactiva o destruye permanentemente a la enzima; la cianida, el mercurio y el plomo son inhibidores irreversibles de muchas enzimas específicas.

Oxidación-Reducción y flujo de energía

En las reacciones de oxidación-reducción (redox), los electrones pasan de una molécula a otra.
La Oxidación es la perdida de electrones.
La Reducción es la ganancia de electrones.
Ambas reacciones ocurren al mismo tiempo debido a que cuando una molécula acepta electrones otra molécula los pierde.

Fotosíntesis

La fotosíntesis utiliza energía para combinar dióxido de carbono y agua produciendo glucosa en la formula general:
6 CO2 + 6 H2O + energía = C6H12O6 + 6 O2
Cuando los átomos de hidrogeno son transferidos al dióxido de carbono a partir del agua, el agua ha sido oxidada y el dióxido de carbono ha sido reducido.
El ingreso de energía en el proceso es importante para la producción de una molécula con gran contenido energético como la glucosa.
Los cloroplastos capturan la energía solar y la convierten en energía química en forma de ATP a través de un sistema transportador de electrones.
El ATP es utilizado junto con los átomos de hidrogeno para reducir la glucosa; cuando el NADP+(nicotinamida adenina dinucleotido fosfato) dona átomos de hidrogeno (H+ + e-) a un sustrato durante la fotosíntesis, el sustrato acepta electrones y por la tanto se reduce.
La reacción que reduce al NADP+ es:
NADP+ + 2e- + H+ = NADPH

Respiración celular

La ecuación general para la respiración celular es opuesta a la de la fotosíntesis:
C6H12O6 + 6 O2 = 6 CO2 + 6 H2O + energía
Cuando el NAD remueve átomos de hidrogeno (H+ + e-) durante la respiración celular, el sustrato pierde electrones y por la tanto se oxida.
Al final de la respiración celular, la glucosa ha sido oxidada a dióxido de carbono y agua, produciéndose moléculas de ATP.
En las vías metabólicas, muchas oxidaciones involucran la presencia de la coenzimas NAD+ (nicotinamida adenina dinucleotido); la molécula acepta dos electrones pero solamente un ion hidrogeno: NAD+ + 2e- + H+ = NADH

Cadena transportadora de electrones

La fotosíntesis y la respiración celular usan la cadena transportadora de electrones que consiste en la presencia de proteínas transportadoras unidas a la membrana que mueven electrones de un transportador a otro.
Los electrones de alta energía son entregados a este sistema y los electrones de baja energía salen de el.
El resultado general del proceso es una serie de reacciones redox; en cada momento los electrones son transferidos a un nuevo transportador, y la energía liberada se utiliza para la producción de ATP
.
Producción de ATP

La síntesis de ATP esta acoplada al sistema cadena transportador de electrones.
Peter Mitchell recibió el premio Nobel en 1978 por su teoría quimiosmótica para la producción de ATP.
En la mitocondria y cloroplasto, los transportadores de electrones se ubican en la membrana.
Los iones de H+ (protones) se almacenan hacia un lado de la membrana debido a que son bombeados allí por proteínas específicas.
El gradiente electroquímico establecido a través de la membrana es usado para proveer la energía necesaria para la producción de ATP.
Las enzimas y otras proteínas transportadoras, denominadas complejo ATP sintasa, atraviesan la membrana; cada complejo contiene un canal que permite a los iones H+ fluir en dirección contraria al gradiente electroquímico.
En la fotosíntesis, los electrones energizados dirigen el bombeo de iones hidrógeno a través de la membrana del tilacoide; como los iones hidrógeno fluyen a través del complejo ATP sintasa, se forma ATP.
Durante la respiración celular, la glucosa metabolizada provee energía para que se forme un gradiente de hidrógeno en la membrana interna de la mitocondria el que también está acoplado al flujo de hidrógeno para la formación de ATP.

ESTRUCTURA Y FUNCION DE LA MEMBRANA CELULAR


Roger Iziga-Goicochea, Hozmara Rocío Torres-Acosta
Modelos de Membrana


A principios del año 1900, los investigadores descubrieron que las moléculas solubles en lípidos ingresaban a la célula más rápidamente que las moléculas solubles en agua, lo que sugirió que los lípidos son los componentes de la membrana plasmática.
Posteriomente, análisis químicos revelaron que la membrana contenía fofolípidos.
Gorter y Grendel (1925) hayaron que la cantidad de fosfolípidos extraidos a partir de glóbulos rojos de la sangre fue suficiente como para formar una bicapa; ellos sugirieron que las colas no polares de los fosfolípidos se ubicaban hacia adentro y las cabezas polares hacia afuera.
Para explicar la permeabilidad de la membrana a las sustancias no lipídicas, Danielli y Davson (1940) propusieron el modelo del "sandwich", con una bicapa de fosfolípidos ubicada entre capas de proteína.
Robertson (1950) propuso que las proteínas se encontraban "incrustadas" en una membrana externa y que todas las membranas celulares tenian una composición similar, lo que se denominó el modelo de "unidad de membrana".
Investigaciones adicionales mostraron una gran diversidad en la estructura y función de la membrana celular.


El Modelo del Mosaico Fluido


En 1972, Singer y Nicolson introdujeron el modelo del mosaico fluido que se acepta hoy.
La membrana plasmática está formada por una bicapa de fosfolípidos en la que las proteínas se encuentran "incrustadas". Estas proteinas están dispersas en la membrana siguiendo un patrón irregular que varía de membrana en membrana.


Estructura y Función de la Membrana Plasmática


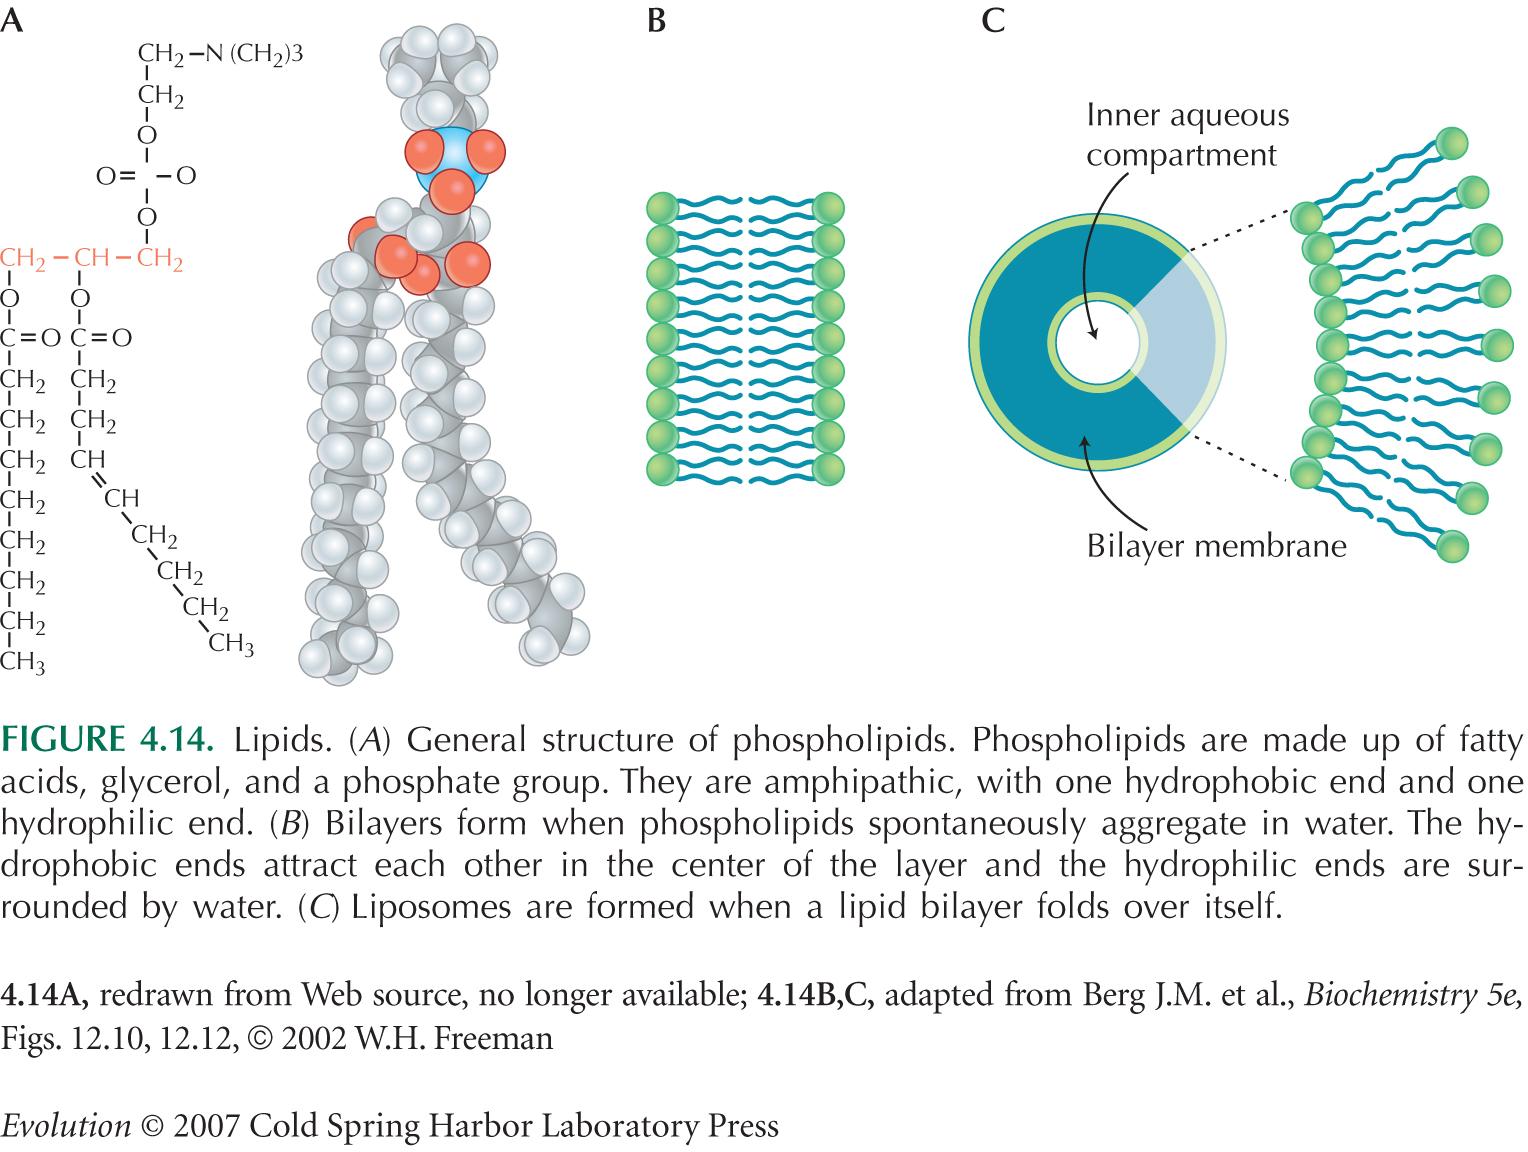
La membrana plasmática es una bicapa de fosfolípidos con proteínas "incrustadas". Los fosfolípidos tienen una región hidrofílica y otra hidrofóbica; las colas no polares (hidrofóbicas) se ubican hacia el interior de la membrana, las cabezas polares (hidrofílicas) se ubican hacia el exterior en contacto con el fluido intra y extracelular. Las proteínas forman un patrón en forma de mosaico en la membrana.
El colesterol es un liupoido que se encuentra en la membrana plasmatica de los animales dando firmeza y fortaleza a la membrana.
Los glucolipidos tienen una estructura similar a la de los fosfolipidos excepto por que la cabeza hidrofilica esta formada por algun tipo de azucar; éstos cumplen funciones de proteccion, de reconocimiento entre otros.
las glicoproteinas tienen unidas cadenas de carbohidratos que se proyectan externamente.
la membrana plasmatica es asimetrica; los glicolipidos y las proteinas se encuentran ubicados hacia el exterior y los filamentos del citoesqueleto se unen a las proteinas solamente en la superficie interna de la membrana.


Carbohidratos


En las células animales, el glucocalix es una "cubierta de azúcares" formado por cadenas de carbohidratos.
Las células son únicas debido en parte a que tienen una gran variedad de cadenas de carbohidratos (la huella digital celular). El sistema inmunológico reconoce tejidos extraños que tienen cadenas inapropiadas de carbohidratos. Las cadenas de carbohidratos determinan los grupos sanguíneos A, B, AB y O en los humanos.


Fluidez de la Membrana Plasmática


A la temperatura corporal, la bicapa de fosfolípidos tiene la consistencia del aceite de olivo. Mientras mayor sea la concentración de residuos de ácidos grasos insaturados, mayor será la fluidez de la bicapa.
En cada monocapa, las cadenas de carbohidratos se pueden mueven de lado a lado con pequeños movimientos y las moléculas de fosfolípidos puede desplazarse de un lado a otro en la monocapa.


Las moléculas de fosfolípidos raramente hacen el movimiento denominado "flip-flop" desplazandose desde una capa a la otra.
La fluidez de la bicapa de fosfolípidos le permite a la célula ser flexible.
Las proteínas se mantienen en sus posiciones en la membrana por que están unidas y ancladas a los filamentos del citoesqueleto; muchas otras proteínas se pueden desplazar en la bicapa fluida.


Función de las Proteínas


La membrana plasmática y los organelos tienen proteínas únicas; los glóbulos rojos o hematíes contienen mas de 50 tipos de proteínas.
Las proteínas de membrana determinan muchas de las funciones de la membrana. Las proteínas que forman canales de membrana le permiten a una molécula atravesar libremente la membrana (e.g., canales de paso de Cl-). Las proteínas transportadoras interactúan selectivamente con una molécula específica de tal manera que ésta pueda cruzar la membrana (e.g., la bomba Na+-K+). Las proteínas de reconocimiento celular son glucoproteínas que permiten al sistema inmunológico distinguir entre células extrañas o invasoras y las células propias del cuerpo. Las proteínas receptoras tienen una forma determinada de manera que una molécula específica pueda unirse a ellas. Las proteínas enzimáticas desempeñan funciones específicas en las reaccioes metabólicas.


Permeabilidad de las Proteínas de Membrana


La membrana es selectivamente permeable; solo ciertas moléculas pueden atravesarla libremente.
Pequeñas moleculas lipídicas no cargadas eléctricamente (alcohol, oxígeno) atraviesan la membrana sin dificultad.
Pequeñas moléculas polares (dióxido de carbono, agua) se mueven en función del gradiente de concentración, desde un área de mayor concentración a una de menor concentración.
Los iones y otras moléculas cargadas eléctricamente no pueden atravesar directamente los componentes hidrofóbicos de la bicapa por lo que usualmente hacen uso de una proteína transportadora para atravesarla.
Los mecanismo de transporte pasivo y activo mueven las moléculas a través de la membrana.
El transporte pasivo permite el moviminto de las molécuals a través de la membrana sin gasto de energía; este proceso incluye la difusión y el transporte facilitado.
El transporte activo requiere de proteínas transportadoras y el uso de energía (ATP) para mover las moléculas por la membrana; este proceso incluye el transporte activo, exocitosis, endocitosis y pinocitosis.


Difusión y Osmosis


La difusión es el movimiento de moléculas desde una zona de mayor concentración a otra de menor concentración.
Una solución contiene un soluto, usualmente un sólido, y un solvente , usulamente un líquido.
En el caso de la difusión de un colorante en el agua, el colorante es el soluto y el agua es el solvente.
Una vez que el soluto es distribuido uniformente en el solvente, los movimientos al azar de las moléculas siguen ocurriendo sin ningún cambio neto en las concentraciones del soluto en solución.
Las propiedades físicas y químicas de las membranas permiten solo a unos pocos tipos de moléculas atravesarla por difusión.
Los gases se difunden por la bicapa de lípidos; e.g., el movimiento de oxígeno desde los alveolos a la sangre de los capilares pulmonares depende de la concentración de oxígeno en los alveolos.
La temperatura, presión, corrientes eléctricas y el tamaño molecular influyen en la velocidad de difusión.
La ósmosis es la difusión de agua a través de una membrana selectivamente permeable.
La osmosis se puede ilustrar con el siguiente ejemplo: Una membrana semipermeable separa dos soluciones. Hacia un lado de la membrana hay más concentración de agua (menor porcentaje de soluto), mientras que en el otro lado hay menos agua (mayor porcentaje de soluto). La membrana no permite el paso del soluto; el agua entra pero el soluto no puede salir. La menbrana permite la entrada de agua con un movimiento neto desde la zona de mayor concentración hacia la zona de menor concentración. La presión osmótica aumenta en uno de los lados del sistema (en donde hay mayor porcentaje de soluto) debido a la ósmosis.
La presión osmótica produce que el agua sea abosorbida por los riñones y sea extraida de los fluidos tisulares.
La tonicidad es la fuerza de una solución respecto de la presión osmótica. Las soluciones isotónicas son aquellas en donde la concentración relativa de los solutos en dos soluciones son iguales; una solucion salina al 0.9% es utilizada en inyecciones debido a que es isotónica en relación a los globulos rojos.
Una solucion hipotónica tiene una concentración de soluto que es menor respecto de otra solución; cuando una célula es colocada en una solución hipotónica, el agua entra en la célula y ésta puede sufrir una citólisis (la célula estalla).
El hinchamiento de una célula vegetal en una solución hipotónica genera una presión de turgencia; ésto le permite a la planta mantenerse en posición erecta o erguida.
Una solución hipertónica tiene una concentración de soluto mucho mayor respecto a otra solución; cuando una célula es colocada en una solución hipertónica, se deshidrata perdiendo tamaño y forma (una condición llamada crenación).
La plasmólisis es la disminución del citoplasma debido a un proceso de ósmosis en una solución hipertónica; si la vacuola central pierde agua, la membrana plasmática se aleja de la pared celular retrayendose al interior.


El Transporte Mediado por Proteínas Transportadoras


La membrana celular impide el paso de muchas sustancias, pero otras entran o salen a velocidades rápidas.
Las proteínas transportadoras son proteínas de membrana que se unen y transportan un solo tipo de molécula o ion; se cree que estas proteínas sufren un cambio en su forma que les permite transportar a las moléculas a través de la membrana.
El transporte facilitado es el transporte de un soluto específico en favor o en contra de su gradiente de concentración (que puede ser alto o bajo), y es facilitado por una proteína transportadora; la glucosa y los aminoácidos se mueven a través de la membrana de esta manera.
El transporte activo es el transporte de un soluto específico a través de la membrana celular en favor o en contra de su gradiente de concentración (que puede ser alto o bajo) utilizando la energía celular en forma de ATP.
El iodo se concentra en las células de la glándula tiroides, la glucosa es completamente absorbida en el tracto digestivo, y el sodio es principalmente reabsorbido en los tubulos renales.
El transporte activo requiere de proteínas transportadoras y ATP; por ello las células deben tener un alto número de mitocondrias cerca de la membrana donde ocurre el transporte activo.
Las proteínas involucradas en el transporte activo se denominan frecuentemente "bombas"; la bomba de sodio-potasio es un importante sistema transportador en las células nerviosas y musculares.
La sal (NaCl) atraviesa la membrana celular debido a que los iones sodio son bombeados y el ion cloro es atraído hacia el ion sodio, y por simple difusión atraviesa canales específicos en la membrana.


Transporte Asistido en la Membrana

En la exocitosis, una vesícula formada en el aparato de golgi se fusiona con la membrana celular mientras ocurre la secreción de su contenido; la insulina sale de las células secretoras de insulina por este método.
Durante la endocitosis, la célula atrapa e ingresa sustancias mediante la formación de vesículas cuando la membrana celular se invagina hacia el interior como en la fagocitosis, pinocitosis o endocitosis mediada por receptores.
En la fagocitosis, las células "ingieren" grandes partículas (e.g., bacterias), formando una vesícula endocítica.
La fagocitosis la realizan comunmente células del tipo ameboide (e.g., amebas y macrofagos).
Cuando la vesícula endocítica se fusiona con un lisosoma, ocurre la digestión de las sustancias internalizadas.
La pinocitosis se produce cuando se forman vesículas alrededor de un líquido o partículas muy pequeñas; este fenomeno es visible solo con la microscopía electrónica.
La endocitosis mediada por recepetores es una forma de pinocitosis y se produce cuando macromoléculas específicas se unen a recepotres en la membrana celular.
Los receptores proteinicos cambian su forma tridimensional para adaptarse y unirse de forma específica con las sustancias (vitaminas, hormonas, lipoproteínas, etc.); se encuentran en una determinada ubicación en la membrana celular.
En el sitio de ubicación se encuentra una invaginación con una cubierta de proteínas fibrosas hacia el lado citoplasmático; cuando la vesícula no esta cubierta con sus proteínas fibrosas, se puede fusionar con un lisosoma.
Las invaginaciones en la membrana están asociadas con el intercambio de sustancias entre las células (e.g., sangre materna y fetal).
Este sistema es selectivo y más eficiente que la pinocitosis; es importante en el movimiento de sustancias desde la sangre materna hacia el feto.
El colesterol (transportado en una molécula denominada lipoproteína de baja densidad-LDL) ingresa a una célula desde el torrente sanguíneo via los receptores de membrana en invaginaciones recubiertas de proteínas ; en la hipocolesterolemia familiar, los receptores LDL no se pueden unir a las invaginaciones recubiertas de la membrana y el exceso de colesterol se acumula en el sistema circulatorio.


Modificación de las Superficies Celulares


Superficies Celulares en Animales
Las uniones entre las células son puntos de contacto que les permiten comportarse de una manera coordinada.
Las uniones de anclaje unen mecánicamente células adyacentes.
En las uniones de adhesión, las placas citoplásmicas internas, firmemente unidas al citoesqueleto dentro de cada célula dan gran resistencia y permiten que el tejido se estire (e.g., en el corazón, estómago, vejiga).
En los desmosomas, un simple punto de unión entre células adyacentes conecta los citoesqueletos de dichas células.
En las uniones estrechas (tight junctions), las proteínas de la membrana celular se unen a la manera de un cierre o ziper ajustado; estas uniones mantienen unidas a las células tan estrechamente que los tejidos se convierten en barreras (e.g., epitelio de revestimiento del estómago, túbulos renales, barrera hemato cefálica).
Una unión comunicamente (gap junction) permite a las células comunicarse; se forma cuando dos canales de membrana idénticos se unen.
Las uniones les dan solidez y fortaleza a las células involucradas, y permiten el movimiento de pequeñas moléculas e iones desde el citoplasma de una célula al citopalsma de otra célula.
Las uniones comunicantes permiten el flujo de iones en la contracción del músculo cardiaco y del músculo liso.
La matriz extracelular es semejante a una red de polisacáridos y proteínas que producen las células animales.
El colágeno le proporciona a la matriz fortaleza y elasticidad lo que le da flexibilidad.
Las proteinas fibronectina y laminina se unen a los receptores de membrana en las células y permiten la comunicación entre la matriz extracelular y el citoplasma; estas proteínas tambien forman "autopistas" que dirigen la migración de las células durante el proceso de desarrollo.
Los proteoglicanos son glicoproteínas que proveen una base de gel que une las varias proteínas en la matriz, y principalmente regulan a las proteínas de señal que se unen a los receptores de membrana.


Pared Celular


Las células vegetales están rodeadas por una pared celular porosa; ésta varía en grosor, dependiendo de la función de la célula.
Las células vegetales tienen una pared celular primaria compuesta del polímero celulosa, que forma una estructura a manera de microfibrillas.
Las fibras de celulosa forman una red cuyos espacios están llenos de moléculas no celulósicas.
Las pectinas permiten a la pared celular amoldarse, y son abundantes en la lámina media que mantienen unida a dos células adyacentes.
Los polisacáridos no celulósicos fortalecen la pared de células maduras.
La lignina añade fortaleza y es un componente común de las paredes celulares secundarias en plantas lenosas.
Los plasmodesmos o canales estrechos ubicados en las membranas celulares, atraviesan las paredes celulares de células vecinas e interconectan sus citoplasmas, permitiendo el intercambio directo de moléculas e iones entre las células.


Fuentes de Información:


Sadava D. et al. 2006. The Science of Biology. 8th Edition. W.H.Freeman


Mader S. 2007. Biology. 9th Edition. McGraw-Hill


Imagenes tomadas de:


http://superfund.pharmacy.arizona.edu/toxamb/images/f1-1-2-b.jpg


http://www.educa.aragob.es/iescarin/depart/biogeo/varios/BiologiaCurtis/Seccion%201/6-11.jpg

ESTRUCTURA Y FUNCION CELULAR


Roger Iziga-Goicochea, Hozmara Rocío Torres-Acosta


Organización en el Nivel Celular


Los estudios detallados de la célula comenzaron a partir del año 1830; algunos de los científicos que contribuyeron a la comprensión de la estructura y función celular fueron Robert Brown, Matías Schleiden, Theodor Schwann y Rudolph Virchow.
La teoría celular señala que todos los organismos están compuestos de células, que éstas son las unidades estrcturales y funcionales de los organismos vivos, y que las células provienen de otras células preexistentes.


Tamaño Celular


Las células pueden tener tamaños que van desde el milímetro hasta el micrómetro. Las células necesitan un área superficial de membrana plasmática lo suficientemente grande como para permitir un adecuado intercambio de materiales con su entorno. La relación área/volumen requiere que las células sean pequeñas. A medida que las células son más grandes en volumen, el área superficial relativa al volumen disminuye.
El tamaño determina cuan activa metabólicamente puede llegar a ser una célula. Las células que necesitan un área superficial mucho mayor utilizan membranas modificadas como pliegues, microvellosidades, etc.


La Microscopía en la actualidad


Los microscopios compuestos usan los rayos de luz enfocados por lentes de vidrio para visualizar las muestras.
Los microscopios electrónicos de transmisión (TEM) usan electrones que son enfocados por magnetos y que pasan a través de la muestra a observar.
El microscopio electrónico de escanéo (SEM) usa el enfoque de electrones a través de las muestras que son recubiertas con metales; los electrones secundarios liberados a partir del metal son capturadores por un detector que permite elaborar una imagen.
La amplificacion de la imagen es una función de la longitud de onda de la luz; a menor longitud de onda los electrones permiten una mayor amplificación de la imagen que con una mayor longitud de onda.
La resolución es la distancia mínima a la cual dos objetos pueden ser vistos como separados.
La microscopia de inmunoflorescencia utiliza anticuerpos fluorescentes para estudiar proteínas u otras moleculas orgánicas dentro de las células.
La microscopia confocal utiliza rayos laser para enfocar planos no profundos en las células; ésto forma una serie de secciones ópticas con las que un computador puede crear una imagen tridimensional.
La microscopia de contraste con sistema de video puede acentuar las regiones iluminadas u oscuras, y usa un computador para contrastar las regiones con colores no reales (falsos).
Los microscopios de campo-brillante, contraste de fase, interferencia diferencial, campo oscuro, son diferentes tipos de microscopios de luz.


Células Procariotas


Las células procariotas carecen de núcleo, son más pequeñas y simples que las células eucariotas (las que tienen núcleo).
Los procariotas se ubican dentro de dos dominios taxonómicos: Bacteria y Archaea. Los organismos en estos dos dominios son muy similares estructuralmente pero diferentes bioquímicamente.

Las Estructura Bacteriana


Las bacterias son extremadamente pequeñas; tienen un tamaño promedio de 1–1.5 μm de ancho y 2–6 μm de largo. Presentan tres formas básicas: esférica (cocos), abastanonada (bacilos) y en espiral (espirilos rígidos o espiroquetas flexibles).


La Envoltura Celular


Está formada por la membrana celular o plasmática, la pared celular y el glicocalix. La membrana celular es una bicapa lipídica que contiene proteínas integrales o periféricas; ésta regula el movimiento de sustancias dentro y fuera de la célula.
La membrana celular puede formar estructuras a manera de "bolsillos o pliegues internos" denominados mesosomas, los que incrementan el área superficial interna de la membrana para su unión con las enzimas.
La pared celular mantiene la forma de la célula, y debe su fortaleza molecular a la presencia de petidogluganos.
El glicocalix es una capa de polisacáridos ubicados en la parte externa de la pared celular; se denomina cápsula si está muy bien organizada y no se remueve fácilmente, o limo si no está bien organizada y se remueve fácilmente.


Citoplasma


El citoplasma es una solución semifluida que contiene agua, moléculas orgánicas e inorgánicas y enzimas.
El nucleoide es una región que contiene una molécula de ADN circular. Los plásmidos son pequeños anillos accesorios de ADN extracromosómico.
Los ribosomas son estructuras formadas de dos subunidades de ARN y proteínas; participan en la síntesis de proteínas.
Los cuerpos de inclusión que se ubican en el citoplasma son gránulos que almacenan sustancias.
Las cianobacterias (también llamadas bacterias azul-verdosas) pueden realizar la fotosíntesis; ellas carecen de cloroplastos pero poseen tilacoides que contienen clorofila y otros pigmentos.


Apéndices


Las bacterias móviles usualmente poseen flagelos; el filamento, el gancho y el cuerpo basal que forman el flagelo trabajan conjuntamente para permitir la rotación flagelar que impulsa y mueve a la bacteria en un medio fluido.
Las fimbrias son pequeñas estructuras semejantes a cerdas fibrosas, unidas a una superficie.
Los pelos sexuales son protruciones tubulares que salen desde una bacteria y son utilizados por éstas para traspasar el ADN de una célula a otra.


Las Células Eucariotas


Las células eucariotas pertenecen al dominio Eukaria, el que incluye a los protistas, hongos, plantas y animales.
Un núcleo membranoso almacena el ADN; los núcleos de las células pueden haberse originado a partir de una invaginación de la membrana celular.
Las células eucariotas son mucho más grandes que las procariotas, y debido a ésto tienen menos área superficial por volumen.
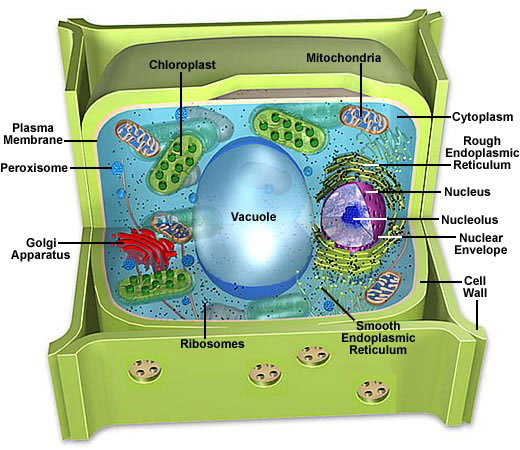
Las células eucariotas están compartimentalizadas; contienen pequeñas estructuras denominadas organelos las que realizan funciones celulares específicas.
Algunas células eucariotas (células vegetales) tienen una pared celular formada de celulosa; los plasmodesmos son canales ubicados en la pared celular que permiten la conexión del citoplasma entre células adyacentes.


Las estructura de las Celulas Eucariotas


El núcleo se comunica con el citoplasma , por ejemplo, a través del desplazamiento de los ribosomas.

Los organelos del sistema de endomembranas se comunican unos con otros; cada organelo contiene su propio grupo de enzimas y produce sus propios productos metabólicos los que se mueven de un organelo a otro utilizando un sistema de transporte por vesículas.
Las mitocondrias (presentes en células animales y vegetales) y cloroplastos (presentes en células vegetales) están relacionados con la producción de energía. Éstos organelos no se comunican con otros organelos; ellos contienen su propio ADN y son autónomos.
El citoesqueleto está formado por una red de proteínas fibrosas que ayudan a mantener la forma y el movimiento en la célula.


Fraccionamiento celular y centrifugación diferencial


El fraccionamiento celular permite a los investigadores aislar y estudiar a los organelos de manera individual. La centrifugacion diferencial es un método por el cula se separan los componentes celulares de acuerdo a su tamaño y densidad. Usando estas dos técnicas, los investigadores pueden obtener preparaciones puras de cualquier componente celular.


El Núcleo y los Ribosomas


El núcleo celular tiene un diámetro aproximado de 5 μm. El nucleoplasma es un medio semifluido del nucleo. La cromatina es un material filamentoso que se enrrolla y da lugar a los cromosomas justo antes de que la division celular se produzca; la cromatina contiene ADN, proteínas y algo de ARN.
Los cromosomas son estructuras semejantes a varillas que se forman durante la división celular; están compuestas de cromatina super enrollada.
El nucleolo es una "región oscura" de cromatina dentro del núcleo; es el sitio donde el ARN ribosómico (ARNr) se une con las proteínas para formar los ribosomas.
El núcleo está separado del citoplasma por una envoltura o membrana nuclear, la que contiene poros nucleares que permiten la entrada o salida de sustancias del núcleo (e.g., subunidades ribosomales, ARN mensajero, proteínas, etc.).
Los ribosomas son estructuras macromoleculares en donde se produce la síntesis de proteínas en las células. En los eucariotas, los ribosomas se pueden encontrar libres o en grupos denominados polirribosomas dentro de sus células.
Los ribosomas se unen al ARN mensajero que proviene del núcleo, el cual instruye a los ribosomas para que estos ensamblen la secuencia correcta de aminoácidos de la proteína a ser sintetizada.

El Sistema de Endomembranas


El sistema de endomembranas está formado por una serie de membranas intracelualres que forman compartimentos en la célula.
Este sistema consta de una envoltura nuclear, las membranas del retículo endoplásmico, el aparato de Golgi y diferentes tipos de vesículas.

El Retículo Endoplásmico


El retículo endoplásmico (RE) es un sistema de canales membranosos y sáculos (vesículas aplanadas) continuos con la membrana externa de la envoltura nuclear. El RE rugoso está cubierto de ribosomas hacia la cara citoplásmica; es el sitio en donde se sintetizan las proteínas que ingresan al interior del RE para ser procesadas y modificadas. El RE liso es continuo con el RE rugoso pero carece de ribosomas; alli se producen varios procesos de síntesis, detoxificación y almacenamiento; el RE liso forma vesículas de transporte.


El Aparato de Golgi


Este organelo debe su nombre a Camilo Golgi, quien lo descubrió en 1898.
El aparato de Golgi está formado por un apilamiento de sáculos ligeramente curvos. El Golgi recibe vesículas cargadas de proteínas que se desprenden desde el RE rugoso y vesículas llenas de lípidos desde el RE liso.
Las enzimas dentro del aparato de Golgi modifican los carbohidratos que fueron agregados a las proteínas en el RE (glucoproteínas); las proteínas y los lípidos son clasificadas y empaquetadas.
Las vesículas formadas a partir de la membrana de la cara mas externa del aparto de Golgi se mueven hacia diferentes lugares en la célula; en la membrana plasmática las vesículas descargan su contenido en forma de secresión, proceso denominado exocitosis debido a que las sustancias salen de la célula.


Lisosomas


Los lisosomas son vesículas rodeadas por una membrana; se originan a partir del aparato de Golgi. Los lisosomas contienen enzimas digestivas muy potentes que se encuentran en un ambiente muy ácido.
Las macromoléculas ingresan a la célula en el interior de vesículas; los lisosomaa se fusionan con las vesículas y digieren su contenido.
Los glóbulos blancos de la sangre que atrapan bacterias usan los lisosomas para digerirlas.
La autodigestión ocurre cuando los lisosomas digeren partes de la misma célula.
Los lisosomas participan en la apoptosis, o muerte celular programada, un evento normal en el desarrollo de los organismos.


Sistema de Endomembranas


Las proteínas producidas en el RE rugoso y los lípidos del RE liso son transportados en vesículas hacia el aparato de Golgi.
El aparato de Golgi modifica estos produstos (proteinas, lípidos) y luego los segrega y empaca en vesículas que van a varios destinos en la células.
Las vesículas secretorias llevan productos hacia la membrana en donde por medio de la exocitosis se produce la secresión.
Los lisosomas se fusionan con las vesículas que ingresan a la célula y digieren las macromoléculas.


Peroxisomas y Vacuolas


Los peroxisomas son vesículas rodeadas de membranas que contienen enzimas específicas. La acción de los peroxisomas en el metabolismo produce peróxido de hidrógeno. El peróxido de hidrógeno (H2O2) es convertido en agua y oxígeno por acción de la enzima catalasa.
Los peroxisomas en las células del higado intervienen en la producción de sales biliares a partir del colesterol, así como también intervienen en la degradación de grasas.
Los peroxisomas estan presentes en las semillas en germinación donde convierten los aceites en azúcares que usan como nutrientes para el crecimiento de la planta.


Vacuolas

Las vacuolas son sacos membranosos mucho más grandes que las vesículas. Las vesículas contractiles en algunos protistas remueven o almacenan de la celula el exceso de agua.


Las vacuolas digestivas digieren nutrientes. Las vacuolas generalmente almacenan sustancias; en las células vegetales contienen agua, azúcares, pigmentos, y toxinas.
La vacuola central de una celula vegetal mantienen la presión de turgencia dentro de la célula, almacena nutrientes, productos de desecho, y degrada organelos a medida que estos envejecen.


Organelos relacionados con la producción de energía

Los cloroplastos son organelos membranosos (un tipo de plastidio) en donde se produce la fotosíntesis. La fotosíntesis se puede representar mediante la siguiente ecuación:
energía solar + dióxido de carbono + agua → carbohidrato + oxígeno
Únicamente las plantas, algas y cierto tipo de bacterias, son capaces de realizar fotosíntesis.
El cloropasplasto está formado por una doble membrana organizada en sacos semejantes a discos aplanados denominados tilacoides; un conjunto de tilacoides que forman algo parecido a un apilamiento de sacos se denomina una grana.
La clorofila y otros pigmentos capturan la energía solar; las enzimas que sintetizan los carbohidrartos se ubican en los cloropalstos.
Los cloroplastos tienen ADN y ribosomas; este hecho contribuye a fortalecer la hipotesis endosimbiótica.
Otros tipos de plastidios, los que difieren en color, forma y función de los cloroplastos, incluyen a los cromoplastos y leucoplastos.
La mitocondrias esta rodeadas por una doble membrana: la membrana interna rodea la matriz y se pliega formando las denominadas crestas mitocondriales. Las mitocondrias son más pequeñas que los cloropastos y frecuentemete varian en su forma. Pueden estar fijas en una sola ubicación o pueden formar largas cadenas móviles.
Las mitcondrias contienen ribosomas y su propio ADN. La matriz de la mitocondria está llena de enzimas que degradan carbohidratos. La produccion de energía química en forma de ATP se realiza en las crestas mitocondriales.
Mas de cuarenta enfermedades diferentes que involucran a las mitocondrias han sido descritas por la ciencia.


El citoesqueleto


El citoesqueleto está constituido por una red de túbulos y filamentos interconectados; se extiende desde el núcleo hacia la membrana plasmática en los eucariotes.
La microscopia electronica muestra un citosol organizado. La microscopia de inmunoflorecencia permite identificar a las proteínas fibrosas.
Lo componentes del citoesqueleto incluyen: filamentos de actina, filamentos intermedios y microtúbulos.


Filamentos de actina


Los filamentos de actina son fibras largas y delgadas (cerca de 7 nm de diámetro) y se organizan a manera de haces o redes. Los filamentos están formados de dos cadenas de monómeros de tubulina que se retuercen entre si para formar una hélice.
Los filamentos de actina cumplen un rol estructural, formando una compleja y densa red que se ubica por debajo de la membrana plasmática; esto permite la formación de seudópodos en el movimiento ameboide.
Los filamentos de actina en las microvellosidades de las celulas intestinales permiten que las celulas se acorten o alargen en el intestino.
En las celulas vegetales, los filamentos forman caminos por los cuales los cloroplastos pueden desplazarse y circular en el interior de la célula.
Los filamentos de actina se mueven cuando interactuán con la miosina; la miosina se une a los filamentos y cuando se produce la ruptura del ATP, se induce un cambio conformacional en la molécula de miosina lo que permite empujar al filamento de actina hacia adelante.
Acciones similares se producen cuando las células se separan en el proceso de división celular.


Filamentos intermedios


Los filamentos intermedios tienen un diámetro de 8–11 nm, entre el tamaño de los filamentos de actina y los microtubulos.
Estos filamentos son estructuras semejantes a cuerdas formadas por polipéptidos fibrosos. Algunos filamentos forman parte de la envoltura nuclear; otros forman parte de la membrana plasmática y de las uniones célula a célula.


Microtúbulos


Los microtubulos estructuras a manera de pequeños cilíndros huecos (25 nm de diámetro y con una longitud de 0.2–25 μm). Están compuestos de una proteína globular denominada tubulina que tiene dos formas: tubulina α y β.
Estas dos proteínas se une y forman un dímero; los dímeros se asocian en hileras para formar las estructuras cilíndricas.
La regulación del emsamblaje de los microtúbulos está bajo el mcontrol del centro organizador de los microtúbulos (MTOC): el principal MTOC se denomina centrosoma.
Los microtubulos se organizan e irradian desde el MTOC, ayudando a mantener la forma de las células y sirviendo como caminos a través de los cuales los organelos se pueden desplazar.
A semejanza de la actina y miosina, la kinesina y dineina son motores moleculáres asociados a los microtúbulos. Diferentes tipos de kinesinas se especializan en el movimiento y transporte de algún tipo de vesícula u organelo celular.
La dineina citoplasmática es similar a la molécula de dineina que se encuentra en el flagelo.


Los Centriolos


Los centriolos son estructuras cilíndricas cortas que forma un anillo con un patrón de tripletes de microtúbulos que tienen la formula de (9 + 0).
En las celulas animales y muchos protistas, los centrosomas contienen dos centriolos que se ubican formando ángulos rectos uno respecto a otro.
Las celulas vegetales y de hongos tiene el equivalente a los centrosomas, pero no contienen centriolos.
Los centriolos forman el cuerpo basal para los cilios y flagelos.


Cílios y Flagelos


Los cílios son cortos, como numerosas proyecciones a manera de pelos que se mueven siguiendo un patrón ondulante (se encuentran en el Paramecium, recubriendo el tracto respiratorio superior en el hombre).
Los flagelos son mas largos, usualmente menos numerosos, como proyecciones que se mueven a manera de un látigo (como en el caso del espermatozoide).
Ambos tiene una estructura similar pero difieren del flagelo procariote.
Los estructuras cilíndricas rodeados de membrana encierran una matriz que contiene un cilíndro formado por 9 pares de microtúbulos que rodean a dos microtúbulos simples dando un patron de microtúbulos con la formula 9 + 2.
Los cílios y los flagelos se mueven cuando los microtúbulos se deslizan moviendose unos sobre otros. Los cilios y flagelos tienen un cuerpo basal en su base con el mismo arreglo de microtúbulos triples como los centriolos.
Los cílios y flagelos crecen por agregación de dímeros de tubulina en sus extremos o puntas.


Fuentes de Información:


Sadava D. et al. 2006. The Science of Biology. 8th Edition. W.H.Freeman


Mader S. 2007. Biology. 9th Edition. McGraw-Hill


Imagenes tomadas de:


http://www.cartage.org.lb/en/themes/Sciences/Zoology/AnimalPhysiology/Anatomy/AnimalCellStructure/animalheader.jpg


http://micro.magnet.fsu.edu/cells/plants/images/plantcell450.jpg


http://www.ict-science-to-society.org/Pathogenomics/images/bacteria_cell.jpg

MACROMOLECULAS

Roger Iziga-Goicochea, Hozmara Rocío Torres-Acosta

Moléculas Orgánicas


Las moléculas orgánicas contienen átomos de carbono y de hidrógeno unidos a otros átomos por medio de enlaces químicos.
Existen cuatro tipos de moléculas orgánicas en los seres vivos, las que se denominan biomoléculas: carbohidratos, lípidos, proteínas, ácidos nucleicos.
Las moléculas orgánicas constituyen un grupo muy diverso; una simple célula bacteriana puede contener unas 5,000 moléculas orgánicas diferentes.


El Atomo de Carbono
La estructura química del átomo de carbono le permite formar hasta cuatro enlaces covalentes con otros elementos químicos (generalmente con los elementos C, H, N, O, P, S).
Los hidrocarbonos son cadenas de átomos de carbono unidos exclusivamente con átomos de hidrógeno; estas cadenas pueden ramificarse y formar compuestos "cerrados" en forma de anillo (ciclicos).
Los átomos de carbono pueden formar dobles o triples enlaces con cierto tipo de átomos (carbono, nitrógeno).


El Esqueleto de Carbono y los Grupos Funcionales
La cadena de átomos de carbono de una molécula orgánica se denomina esqueleto.
Los grupos funcionales son grupos de átomos específicos unidos al esqueleto de carbono con una estructura y funciones características.
Como un ejemplo, la adición de un –OH (grupo hidroxilo) a un esqueleto de carbono transforma la molécula en un alcohol.
El alcohol etílico (etanol) es hidrofílico (se disuelve en agua) debido a que el grupo hidroxilo es polar.
Las moléculas orgánicas no polares son hidrofóbicas (no se disuelven en agua) a menos que posean un grupo funcional polar. Un ejemplo es el etano.
Dependiendo de sus grupos funcionales, una molécula orgánica puede ser ácida e hidrofílica. Un ejemplo es un hidrocarbono que contiene un grupo carboxilo; éstos grupos se ionizan en solución liberando iones hidrógeno, convirtiendose en moléculas polares y ácidas.
Debido a que las células tienen entre un 70–90% de agua, la forma en que una molécula orgánica intectatua con el agua afecta e influye en su función.
Los isómeros son moléculas con formulas químicas idénticas, pero con una ubicación espacial de sus atomos distinta (e.g., gliceraldehído y dihidroxiacetona).


Las Macromoléculas de las Células
Los carbohidratos, lípidos, proteínas y ácidos nucleicos se denominan macromoléculas debido a su gran tamaño.
Las macromoléculas más grandes se llaman polímeros, y se construyen formando muchas uniones o enlaces entre pequeñas subunidades del mismo tipo denominadas monómeros. Ejemplos: los aminoácidos (monómeros) se unen para formar proteínas (polímero); los nucleótidos (monómeros) se unen para formar los ácidos nucleicos (polímero).
Las enzimas que se encuentran en las células llevan a cabo reacciones de deshidratación para sintetizar macromoléculas. En una reacción de deshidratación, una molécula de agua es removida y extraida para formar un enlace covalente entre dos átomos (de los monomenros).
En la reacción de deshidratación, un grupo hidroxilo (—OH) es removido desde un monómero y un átomo de hidrógeno (—H) es removido desde el otro monómero.
Esta reacción produce la formación de agua, y debido a que el agua es extraida a partir de los monómeros se denomina reacción de deshidratación.
Las reacciones de hidrólisis ("ruptura del agua") rompen la estructura de los polímeros de manera inversa a lo que hace la reacción de deshidratación; un grupo hidroxilo (—OH) de la molécula del agua se une a uno de los monómeros, y un hidrógeno (—H) se une al otro monómero.
Las enzimas son moléculas que aceleran las reacciones químicas; una enzima puede participar en la reacción química, pero la reacción no cambia la estructura molecular de la enzima.


Los Carbohidratos
Monosacáridos: fuente de energia inmediata

Los monosacáridos son azúcares simples con una estructura de 3 a 7 átomos de carbono.
Muchos monosacáridos presentes en los seres vivos tienen 6 átomos de carbono (hexosas).
La glucosa y la fructuosa son hexosas, pero son isómeros uno de otro; cada uno tiene la formula (C6H12O6) pero difieren en el arreglo y ubicación espacial de sus átomos (estructura tridimensional).
La glucosa se encuentra en la sangre; es la fuente primaria de energía bioquímica (ATP) en casi todos los organismos.
La ribosa y la desoxirribosa son azúcares de 5 átomos de carbono (pentosas) que contribuyen a la formación de los esqueletos del ARN y el ADN respectivamente.


Disacáridos: diferentes usos
Los disacáridos contienen dos monosacáridos unidos mediante un enlace (glucosídico) que se forma por una reacción de deshdratación.
La lactosa está compuesta por galactosa y glucosa, y se encuentra presente en la leche.
La maltosa está compuesta de dos moléculas de glucosa; se forma en el tracto digestivo durante la digestión del almidón.
La sacarosa (azúcar de mesa) está formada de glucosa y fructuosa; es usada para endulzar los alimentos.


Los Polisacáridos: moléculas de almacenamiento de energía
Los polisacáridos son polímeros de monosacáridos. No son solubles en agua y no atraviesan la membrana celular.
El almidón, que se encuentra presente en las plantas, es una larga cadena de moléculas de glucosa que contiene relativamente pocas ramificaciones. La amilosa y la amilopectina son dos formas en que el almidón se encuentra en los tejidos de las plantas.
El glucógeno es un polímero de glucosa altamente ramificado. Es la forma como la glucosa se almacena en los tejidos animales.


Los Polisacáridos: moléculas estructurales
La celulosa es un polímero de glucosa que forma microfibrillas, y es el constituyente primario de la pared celular de las plantas.
El algodón es casi celulosa pura.
La celulosa no es digerible por el ser humano debido al tipo de enlace glucosídico que se forma entre las moléculas de glucosa.
Los animales que pastan pueden digerir la celulosa debido a sus estómagos especiales y a las bacterias que poseen.
La celulosa es la molécula orgánica más abundante de la tierra.
La quitina es un polímero de glucosa con un grupo amino unido a cada glucosa.
La quitina es el constituyente primario del exoesqueleto de los cangrejos y otros animales relacionados (langosta, insectos, etc.).
La quitina no es diregible para los humanos.


Lípidos


Los lípidos tienen estructuras diferentes. Son hidrocarbonos insolubles en agua debido a que carecen de grupos polares.
Las grasas proveen de material aislante y energía de reserva a los animales.
Los fosfolípidos forman las membranas celulares y los esteroides son importantes como moléculas mensageras en las células y el organismo entero.
Las ceras cumplen funciones protectoras en muchos organismos.


Los Triglicéridos: energía de almacenamiento de largo plazo
Las grasas y aceites contienen dos unidades moleculares: glicerol y ácidos grasos.
El glicerol es un compuesto soluble en agua que contiene tres grupos hidroxilo.
Los triglicéridos están formados por una molécula de glicerol a la que se han unido tres moléculas de ácidos grasos mediante una reacción de deshidratación.
Un ácido graso es una larga cadena hidrocarbonada con un grupo carboxilo (ácido) en uno de sus extremos.
Muchos ácidos grasos presentes en las células contienen entre 16 a 18 átomos de carbono por molécula.
Los ácidos grasos saturados no tienen enlaces dobles entre sus átomos de carbono.
Los ácidos grasos insaturados tienen enlaces dobles en el esqueleto de carbono, donde hay menos de dos átomos de hidrógeno por átomo de carbono.
Las grasas contienen ácidos grasos saturados y son sólidas a temperatura ambiente (e.g., mantequilla).
Los aceites contienen ácidos grasos insaturados y son líquidos a temperatura ambiente.
Los animales usan las grasas en lugar del glucógeno para almacenar energía de largo plazo; las grasas almacena mayor cantidad de energía.

Los Fosfolípidos: componentes de las membranas celulares
Los fosfolípidos son grasas neutras en las que el tercer ácido graso es reemplazado por un grupo fosfato polar (hidrofílico); el grupo fosfato se une usualmente a otro grupo orgánico (denominado R).
Las cadenas hidrocarbonadas de los ácidos grasos cosntituyen los extremos o "colas" no polares (hidrofóbicas).
Los fosfolípidos se organizan entre formando dobles capas en el agua, de tal manera que las cabezas polares están en contacto con las moléculas de agua, y los extremos o "colas" no polares están en contacto entre ellos, alejadas del agua.
Esta propiedad permite a los fosfolípidos formar una interface o separación entre dos soluciones(e.g., el interior y exterior de una célula); la membrana celular o plasmática es una bicapa de fosfolípidos.


Esteroides: cuatro anillos fusionados
Los esteroides tienen un esqueleto de cuatro anillos de carbono fusionados, y varian de acuerdo a los grupos funcionales que tienen unidos; estos grupos funcionales determinan las funciones biológicas de los diferentes esteroides que existen.
El colesterol es un componente de la membrana de las celulas animales, y es un precursor de las hormonas esteroideas (aldosterona, testosterona, estrogeno, etc.).
Una dietas con alto contenido de grasas saturadas y colesterol puede ocasionar desordenes cardiovasculares y circulatorios.


Ceras
Las ceras son largas cadenas de ácidos grasos unidas a grandes moléculas de alcoholes.
Las ceras tiene un alto punto de fusión, son impermeables y resisten la degradación.
Las ceras forman una cubierta protectora en las plantas, que retarda la pérdida de agua por evaporación en las hojas y los frutos.
En los animales, las ceras mantienen la piel y los pelos, atrapan el polvo y la suciedad, y forman el material estructural del panal de las abejas.


Proteínas
Funcion de las Proteínas
Las proteínas estructurales como la queratina, forman parte de los cabellos y uñas, y las fibras de colágeno forman parte de muchas estructuras del cuerpo (e.g., ligamentos, tendones, piel).
Las enzimas son proteínas que actúan como catalizadores biológicos que aceleran las reacciones químicas en los sistemas vivos.
La función de transporte incluye a la proteínas de canales y proteínas transportadoras que se encuentran ubicadas en la membrana celular, y la hemoglobina que transporta el oxígeno en los globulos rojos.
La función de defensa la realizan los anticuerpos que previenen las infecciones.
Las hormonas pueden ser proteínas regulatorias que influyen en el metabolismo celular. Por ejemplo, la insulina regula el contenido de glucosa en la sangre y dentro de la célula.
El movimiento en las células y la contracción muscular son realizadas por las proteínas miosina y actina.


Los Aminoácidos: bloques de construcción de las proteínas
Los aminoácidos contienen un grupo ácido (— COOH) y un grupo amino (—NH2).
Los aminoácidos se diferencian unos de otros por la presencia de un grupo R particular, que varia desde un atomo de hidrógeno hasta complicadas estructuras en anillo.
El grupo R del aminoácido cisteína consiste de un sulfidrilo (—SH) que puede conectar una cadana de aminoácidos con otra, por medio de la formación de un enlace disulfuro (— S—S—).
Comunmente podemos encontrar 20 aminoácidos diferentes en las células.


Péptidos
Un enlace peptídico es un enlace covalente que se forma entre dos aminoácidos.
Los átomos de un enlace peptídico comparten electrones de forma no equitativa (el oxígeno es mas electronegativo que el nitrógeno).
La polaridad de un enlace peptídico le permite a los átomos de hidrógeno interactuar y unirse con diferentes aminoácidos en un polipéptido.
Un péptido está formado por dos o más aminoácidos unidos por enñaces petídicos. Los polipéptidos son cadenas de muchos aminoácidos unidos.
Una proteína puede contener más de una cadena polipeptídica, almacenando una gran cantidad de aminoácidos.
La estructura tridimensional de una proteína es crítica; una secuencia anormal de aminoácidos producirá una forma anormal de la proteína, la que no funcionará de manera normal.
Frederick Sanger determinó la primera secuencia de una proteína (de la hormona insulina) en 1953.


La Forma de las Proteínas
La forma de la proteína determina su función en el organismo; las proteínas pueden tener hasta 4 niveles de organización (pero no todas las proteínas tienen los cuatro niveles).
La estructura primaria de la proteína consiste en la secuencia lineal particular de aminoácidos.
Así como el alfabeto tiene muchas letras, los 20 aminoácidos se pueden unir y combinar en una gran variedad de formas para producir una gran cantidad de "palabras" (polipéptidos).
La estructura secuendaria resulta cuando un polipéptido se pliega formando una hélice, o se dobla formando pliegues en una determinada forma particular.
La hélice alfa fue el primer patrón de la estructura secundaria en ser descubierto.
En un enlace petídico, el oxígeno es parcialmente negativo, el hidrógeno es parcialmente positivo.
Esto permite formar enlaces o puentes de hidrógeno entre los grupos C=O de un aminoácidoy los grupos N—H de otro.
Los puentes de hidrógeno que se forman cada 4 aminoácidos aproximadamente mantienen la forma de espiral de la helice alfa.
La hoja plegada beta fue el segundo patron de la estructura secundaria en ser descubierto.
Los polipéptidos organizados en hojas plegadas beta pueden cambiar de dirección y regresar o retornar sobre si mismos.
Los puentes de hidrógeno se forman entre hojas beta extendidas de forma paralela.
Las proteínas fibrosas (e.g. queratina) son proteínas estructurales con hélices alfa u hojas pelgadas beta unidas por puentes de hidrógeno.
La estructura terciaria resulta cuando las proteínas se pliegan sobre si misma dando lugar a estructuras tridimensionales. Esto se debe a la interacción en los grupos R de los aminoácidos.
Las proteínas globulares tienden a formar estructuras redondeadas a manera de esferas o globos.
Los fuertes enlaces disulfuro mantienen unidas las estructuras terciarias; los enlaces de hidrógeno, iónicos y covalentes contribuyen a mantener la forma tridimensional.
La estructura cuaternaria resulta cuando dos o más polipéptidos se unen e interactúan formando una sola estructura compuesta por varias subunidades o monómeros.
La hemoglobina es una proteína globular con una estructura cuaternaria conformada por cuatro polipéptidos; cada polipéptido tiene una estructura primaria, secundaria y terciaria.


Enfermedades Relacionadas al Plegamiento de las Proteínas
A medida que las proteínas son sintetizadas, otras proteínas denominadas "chaperonas" les ayudan en el proceso de su plegamiento normal para que adquieran su forma tridimensional; las proteínas chaperonas pueden corregir los plegamientos incorrectos en las proteínas recien sisntetizadas que se van formando, previniendo que éstas adquieran una forma incorrecta.
Ciertas enfermedades (e.g., la encefalitis espongiforme transmisible, o TSEs) se producen debido a un plegamiento equivocado de unas proteínas denominadas priones.


Ácidos Nucleicos
Los ácidos nucleicos son polímeros de nucleótidos y cumplen una serie de funciones específicas en los organismos vivos.
El ADN (ácido desoxirribonucleico) almacena el código genético para su propia replicación, así como para la secuencia de aminoácidos en las proteínas.
El ARN (ácido ribonucleico) permite la traducción del código genético del ADN en la secuencia de aminoácidos de las proteínas; existen otras funciones del ARN en las células.
Algunos nucleótidos tienen funciones metabólicas independientes en las células.
Las coenzimas son moléculas que facilitan las reacciones enzimáticas.
El ATP (adenosina trifosfato) es un nucleótido que se utiliza para suministrar energía en las reacciones de síntesis y otras actividades metabólicas que requieren energía en los seres vivos.


Estructura del ADN y ARN
Los nucleótidos son un complejo molecular de tres tipos de moléculas: un fosfato (acido fosforico), un azúcar pentosa y una base nitrogenada.
El ADN y el ARN se diferencian en lo siguiente:
Los nucleótidos del ADN contienen el azúcar desoxirribosa; los nucleótidos del ARN contienen ribosa.
En el ARN, la base uracilo está presente en lugar de la timina. Tanto el ARN como el ADN contienen adenina, guanina y citosina.
El ADN es una doble cadena que contiene pares de bases complementarias; el ARN es una estructura de una cadena simple.
La complementariedad de las pares de bases se produce cuando dos cadenas de ADN se mantienen unidas a través de los puentes de hidrógeno que se forman entre las purinas y las pirimidinas.
El número de las purinas siempre es igual al número de las pirimidinas.
En el ADN, la timina siempre se aparea con la adenina; la citosina simpre se aparea con la guanina. De esta manera, en el ADN se cumple que A + G = C + T.
Las dos cadenas del ADN forman una estructura en forma de una doble hélice; el ARN no forma hélices.


ATP (Adenosina Trifosfato)
El ATP es un nucleótido en el que la adenosina esta compuesta de ribosa y adenina.
El trifosfato deriva su nombre de los tres grupos fosfatos unidos a la ribosa.
El ATP es una molécula de "alta energía" debido a que los dos últimos enlaces fosfato liberan energía cuando son rotos.
En las células, el enlace fosfato terminal es hidrolizado produciendo ADP (adenosina difosfato); se libera energía cuando este proceso ocurre.
La energía liberada a partir del ATP se utiliza en los procesos que requieren energía dentro de la célula, tales como en la reacciones de síntesis, en la contracción muscular, en la transmisión del impulso nervioso.
Fuentes de Información:
Sadava D. et al. 2006. The Science of Biology. 8th Edition. W.H.Freeman
Mader S. 2007. Biology. 9th Edition. McGraw-Hill
Imágenes tomadas de:

La crisis de la extinción se acelera - UICN


Miércoles 12 de septiembre de 2007 a las 12 del mediodía GTM


La crisis de la extinción se acelera: la Lista Roja muestra que simios, corales, buitres y delfines, están en peligro


La Lista Roja de Especies Amenazadas 2007 de la UICN™, la evaluación de plantas y animales de la Tierra más ampliamente aceptada en todo el mundo, suena la alarma con respecto a la crisis de la extinción global


Gland, Suiza, 12 de septiembre de 2007, Unión Mundial para la Naturaleza (UICN) – La vida sobre la Tierra está desapareciendo rápidamente y continuará haciéndolo salvo que se encaren acciones urgentes, según la Lista Roja de Especies Amenazadas 2007 de la UICN.
Ya hay 41.415 especies en la Lista Roja de la UICN y ahora son 16.306 las que están amenazadas de extinción, comparado con las 16.118 que lo estaban el año pasado. El número total de especies extinguidas ha llegado a 785 y a otras 65 sólo se las encuentra bajo cautiverio o cultivo.
Uno de cada cuatro mamíferos, una de cada ocho aves, un tercio de todos los anfibios y el 70% de las plantas que han sido evaluadas en la Lista Roja 2007 de la UICN están en situación de riesgo.
Julia Marton-Lefèvre, Directora General de la Unión Mundial para la Naturaleza (UICN) afirmó: “La Lista Roja de la UICN de este año muestra que los valiosos esfuerzos realizados hasta ahora para proteger a las especies no son suficientes. El ritmo de pérdida de la biodiversidad está aumentando y necesitamos actuar ya para reducirlo de manera significativa e impedir esta crisis global de la extinción. Es posible hacerlo, pero solo mediante un esfuerzo concertado en todos los niveles de la sociedad.”
La Lista Roja de Especies Amenazadas de la UICN está ampliamente reconocida como la evaluación más efectiva del estado actual de las especies en todo el mundo. La Lista clasifica las especies de acuerdo a su riesgo de extinción y hace resaltar con fuerza el decline que está sufriendo la biodiversidad de la Tierra y el impacto que está teniendo la humanidad sobre la vida de la Tierra. Jane Smart, Jefa del Programa de Especies de la UICN, dijo: “Necesitamos conocer el estado de las especies para poder actuar de manera apropiada. La Lista Roja de la UICN lo hace, midiendo la situación general de la biodiversidad, el ritmo de pérdida y las causas del decline.
“Nuestras vidas están inextricablemente ligadas a la biodiversidad y en última instancia su protección es esencial para nuestra supervivencia. Cuando el mundo comienza a responder a la actual crisis de pérdida de biodiversidad, es necesaria la información que ofrece la Lista Roja de la UICN para diseñar e implementar estrategias efectivas de conservación, para beneficio de las personas y de la naturaleza.”

Algunos ejemplos salientes de la Lista Roja de la UICN de este año

La declinación de los grandes simios
Una reevaluación de nuestros parientes más cercanos, los grandes simios, nos revela una imagen sombría. El gorila occidental (Gorilla gorilla) ha pasado de la situación de especie en peligro a la de especie en peligro crítico, después de constatar que la principal subespecie, el gorila occidental de las tierras bajas (Gorilla gorilla gorilla), ha sido diezmado debido al comercio de la carne de monte y al virus del ébola. Su población ha disminuido más de un 60% en los últimos 20-25 años, y cerca de un tercio de la población total que vive dentro de áreas protegidas ha sido eliminada por el virus del ébola en los últimos 15 años.
El orangután de Sumatra (Pongo abelii) continúa en la categoría de especie en peligro crítico y el orangután de Borneo (Pongo pygmaeus) en la de especie en peligro. Ambos están amenazados por la pérdida de hábitat debida a la tala legal e ilegal de los bosques para dar lugar a las plantaciones de palmera aceitera. En Borneo, el área plantada con esta especie pasó de 2.000 a 27.000 km2 entre 1984 y 2003, dejando solo 86.000 km2 de hábitat disponible para la especie en toda la isla.


Primera inclusión de corales en la Lista Roja de la UICN
Por primera vez se han evaluado los corales y se los ha agregado a la Lista Roja de la UICN. Han entrado en la Lista 10 especies de las Galápagos, con dos de ellas en la categoría de especie en peligro crítico y una en la de especie vulnerable. El coral solitario de Wellington (Rhizopsammia wellingtoni) ha sido incluido como especie en peligro crítico (posiblemente extinta). Las principales amenazas para estas especies provienen de los efectos de El Niño y del cambio climático.
Además, se han agregado a la Lista Roja de la UICN 74 algas de las Islas Galápagos. Diez están en la categoría de especie en peligro crítico, de las cuales seis se consideran como posiblemente extintas. Las especies de aguas frías están amenazadas por el cambio climático y el aumento de la temperatura del mar que caracterizan a El Niño. Las algas están afectadas indirectamente por la pesca excesiva ya que ésta elimina a los predadores de la cadena alimenticia, haciendo que aumenten los erizos de mar y otros herbívoros que las comen.

El delfín del río Yangtzé incluido como especie en peligro crítico (posiblemente extinta)
Después de una intensa pero infructuosa búsqueda del delfín del río o baiji (Lipotes vexillifer) en noviembre y diciembre pasados, se lo ha incluido en la categoría de especie en peligro crítico (posiblemente extinta). La especie no ha sido incluida en una categoría más alta debido a que se necesita hacer más rastreos antes de clasificarla como extinta. Los científicos chinos están investigando un posible avistamiento anunciado a fines de agosto de 2007. Las principales amenazas para la especie incluyen la pesca, el tráfico fluvial, la contaminación y la degradación del hábitat.
El cocodrilo de India y Nepal, el gavial (Gavialis gangeticus), también se ve amenazado por la degradación del hábitat y ha pasado de la categoría de especie en peligro a la de especie en peligro crítico. Su población ha declinado recientemente en un 58%, pasando de 436 adultos reproductores en 1997 a sólo 182 en 2006. Las represas, los proyectos de irrigación, la extracción de arena y los diques han ocupado gran parte de su hábitat, reduciéndolo a un 2% de lo que era anteriormente.

La crisis de los buitres
Este año el número total de especies de aves en la Lista Roja de la UICN es de 9.956, con 1.217 de ellas clasificadas como especies amenazadas. Los buitres han mermado en África y Asia, con cinco especies reclasificadas en la Lista. En Asia, el buitre de cabeza roja (Sarcogyps calvus) pasó de estar en la categoría de especie casi amenazada a la de especie en peligro crítico, en tanto que el buitre egipcio (Neophron percnopterus) pasó de la categoría de preocupación menor a la de en peligro. La rápida disminución de estas aves durante los últimos ocho años se debe al uso del medicamento llamado diclofenac en el tratamiento del ganado.
En África, se han reclasificado tres especies de buitres, incluidos el buitre de cabeza blanca (Trigonoceps occipitalis), que ha pasado de la categoría de preocupación menor a la de vulnerable, y el buitre de manto blanco (Gyps africanus) y el buitre moteado (Gyps rueppellii), que han pasado de la categoría de especie preocupación menor a la de casi amenazada. La declinación de estas aves se debe a la falta de alimento como consecuencia de la merma de mamíferos silvestres de pasta, la pérdida de hábitat y los choques con los cables eléctricos. También se han envenenado al comer osamentas rociadas deliberadamente con insecticidas destinadas a combatir predadores del ganado como hienas, chacales y grandes felinos, pero que también matan a los buitres.

Los reptiles de América del Norte entran en la Lista Roja de la UICN
Como resultado de una gran evaluación de los reptiles de México y América del Norte se han agregado a la Lista Roja de la UICN 723 especies, elevando el total a 738 reptiles de esta región. De ellos, 90 especies están amenazadas de extinción. Dos tortugas de agua dulce de México, la tortuga escurridiza de Cuatro Ciénagas (Trachemys taylori) y la tortuga escurridiza pintada (Trachemys ornata), están en las categorías de especie en peligro y especie vulnerable, respectivamente. Ambas especies están amenazadas por la pérdida de hábitat. También se ha incluido en la Lista a la víbora de cascabel de la Isla de Santa Catalina en México (Crotalus catalinensis) en la categoría de especie en peligro crítico, como consecuencia de la persecución a que la someten los recolectores ilegales.

Plantas en peligro
Ahora hay 12.043 plantas en la Lista Roja de la UICN, de las cuales 8.447 están consideradas como especies amenazadas. La begonia de tallo lanoso (Begonia eiromischa) es la única especie que ha sido declarada extinta este año. Esta planta de Malasia se la conoce solo por las recolecciones hechas en 1886 y 1898 en la Isla de Penang. Las intensas búsquedas hechas en los bosques cercanos no han permitido encontrar ningún ejemplar en los últimos 100 años.
Por primera vez se ha evaluado e incluido en la Lista Roja de la UICN al albaricoque silvestre (Armeniaca vulgaris) de Asia Central, clasificado como especie en peligro. La especie es el ancestro directo de plantas que son ampliamente cultivadas en todo el mundo, pero su población está mermando como consecuencia de la pérdida de hábitat debida al desarrollo turístico y a su explotación para la madera, como alimento y para extraer material genético.

El cardenal de Banggai fuertemente explotado por el comercio para los acuarios
La pesca excesiva sigue ejerciendo presión sobre muchas especies de peces como lo hace también el comercio para los acuarios. El cardenal de Banggai (Pterapogon kauderni), que es muy apreciado en dicho comercio, ha sido incluido por primera vez en la Lista Roja de la UICN, en la categoría de especie en peligro. Este pez, que solo se encuentra en el Archipiélago de Banggai, cerca de Sulawesi, en Indonesia, ha sido fuertemente explotado, con cerca de 900.000 especimenes capturados cada año. Los conservacionistas piden que se lo críe en cautividad para el comercio destinado a los acuarios y permitir así que sus poblaciones silvestres se recuperen.
Estos ejemplos tomados de la Lista Roja de 2007 son solo unos pocos casos que demuestran el rápido ritmo de pérdida de biodiversidad en todo el mundo. La desaparición de especies tiene una repercusión directa sobre la vida de las personas. Por ejemplo, la merma de las especies de peces de agua dulce priva a las comunidades pobres no solo de su única fuente importante de alimento sino también de sus medios de subsistencia.

La pérdida de especies es nuestra pérdida
En algunos casos las acciones conservación están deteniendo la pérdida de la biodiversidad, pero todavía hay muchas especies que necesitan más atención. Este año, solo una especie ha pasado a una categoría de amenaza más baja. Se trata del periquito de Mauricio (Psittacula eques), que era uno de los loros más raros del mundo hace 15 años y que pasó de la categoría de especie en peligro crítico a en peligro. La mejoría en su situación se debe a los exitosos esfuerzos de conservación, que incluyen una estrecha vigilancia de sus lugares de anidamiento y una alimentación complementaria, combinadas con un programa de cría en cautividad y suelta de ejemplares.
Jean-Christophe Vié, Subjefe del Programa de Especies de la UICN, dijo: "Sabemos, a partir de varias experiencias, que la conservación puede funcionar, pero desafortunadamente este año estamos constatando una mejoría solamente en una especie. Ello es realmente preocupante a la luz de los compromisos adquiridos por los gobiernos de todo el mundo, como la meta 2010 de reducción de la tasa de pérdida de biodiversidad. Está claro que hay que hacer mucho más para apoyar el trabajo de las miles de personas entusiastas que trabajan cada día en todas partes del mundo para preservar la diversidad de la vida en este planeta.”
Holly Dublin, Presidenta de la Comisión de Supervivencia de Especies de la UICN afirmó: “Las redes de conservación dedicadas a combatir la crisis de la extinción, como la Comisión de Supervivencia de Especies, están trabajando de manera efectiva. Pero se necesita mucha más ayuda y apoyo, ya que los ambientalistas no pueden hacerlo solos. El desafío de la crisis de la extinción también necesita la atención y la acción del público en general, del sector privado y de los responsables de las políticas a fin de asegurar que la biodiversidad global permanezca intacta para las generaciones futuras.”

Se invita a hacer donaciones para ayudar a la UICN a combatir la crisis de la extinción: http://www.iucn.org/themes/ssc/donation/donation_page.htm

Notas para los editores
Para mayor información sobre las especies de la Lista Roja de la UICN de este año por favor visite: www.iucn.org/redlist y http://www.iucnredlist.org/
Se dispone de un paquete completo sobre la Lista Roja 2007de la UICN destinado a los medios, que incluye una galería de fotos, un video ‘B-roll’ de dos minutos, cambios en las especies, hojas informativas sobre especies clave, estudios de caso y estadísticas.
El vídeo ‘B-roll’ de dos minutos y la galería de fotos de la Lista Roja de Especies Amenazadas de la UICN fueron preparados por Arkive http://www.arkive.org/

Información adicional

La Lista Roja de Especies Amenazadas de la UICN clasifica a las especies según su riesgo de extinción. Se trata de una base de datos disponible en línea, y donde se pueden hacer búsquedas, que contiene información sobre el estado actual de más de 41.000 especies, con información complementaria sobre ellas. Su objetivo primordial es identificar y documentar las especies que necesitan mayor atención en cuanto a su conservación y ofrecer un índice del estado de la biodiversidad.
Las categorías de la Lista Roja de Especies Amenazadas de la UICN, en orden descendente de amenaza son:
Extinto o extinto en estado silvestre;
En peligro crítico, en peligro y vulnerable: especies amenazadas de extinción total;
Casi amenazado: especies cercanas al umbral de amenazadas o que estarían en la categoría de amenazadas sin las medidas de conservación que están en marcha;
Preocupación menor: especies evaluadas con riesgo de extinción bajo;
Datos insuficientes: especies que no se han evaluado debido a la escasez de datos.
En peligro critico (posiblemente extinta): Esta no es una categoría de la Lista Roja pero se usa la expresión para identificar aquellas especies en peligro crítico que con mucha probabilidad ya se han extinguido pero para las que aún se requiere confirmación (por ejemplo haciendo búsquedas más extensivas que no permitan encontrar ningún ejemplar).
Se desconoce el número total de especies que existen en el planeta. Los cálculos varían entre 10 y 100 millones, pero la estimación más ampliamente aceptada es la de 15 millones de especies. En la actualidad se conocen entre 1.700.000 y 1.800.000 especies.
Los seres humanos son, directa o indirectamente, la principal causa de la declinación de la mayoría de las especies. La destrucción y degradación del hábitat sigue siendo la principal causa de dicha declinación, junto con otras amenazas que nos son muy familiares, como las especies invasoras, la recolección insostenible, la caza excesiva, la contaminación y las enfermedades. Cada vez se reconoce más que el cambio climático es una seria amenaza que puede aumentar los peligros antes mencionados.
Cada cuadro años se hacen análisis de fondo de la Lista Roja de la UICN, realizados hasta ahora en 1996, 2000 y 2004. La Evaluación mundial de las especies (Global Species Assessment) está disponible en: http://www.iucn.org/themes/ssc/red_list_2004/2004home.htm
Las conclusiones clave de los análisis de fondo realizados hasta ahora incluyen:
El número de especies amenazadas está aumentando en casi todos los principales grupos taxonómicos.
Los índices de la Lista Roja de la UICN, una nueva herramienta para medir las tendencias del riesgo de extinción, son importantes para monitorear el progreso hacia la meta 2010. Se dispone de índices para las aves y los anfibios, los que muestran que su situación ha empeorado de manera constante desde la década de 1980. Se puede calcular un Índice de la Lista Roja de la UICN para cualquier grupo que haya sido evaluado por lo menos dos veces.
Las aves, los mamíferos y los anfibios más amenazados se encuentran en los continentes tropicales, o sea en las regiones con bosques tropicales de latifoliadas en los que se cree que viven la gran mayoría de las especies terrestres y de agua dulce de la Tierra.
De los países evaluados, es en Australia, Brasil, China y México donde se encuentra el mayor número de especies amenazadas.
Los cálculos varían considerablemente, pero el ritmo actual de extinción es por lo menos entre 100 y 1000 veces mayor que las tasas naturales históricas.
La inmensa mayoría de las extinciones que han tenido lugar desde el año 1500 han ocurrido en las islas oceánicas, pero durante los últimos 20 años las extinciones continentales se han vuelto tan comunes como las insulares.
Todas las actualizaciones de la Lista Roja de la UICN ayudan a hacer una evaluación mundial de la biodiversidad. Se está trabajando en la reevaluación de la situación de todos los mamíferos (aproximadamente 6.000 especies) y de todas las aves (aproximadamente 10.000 especies) y para evaluar por primera vez a todos los reptiles (aproximadamente 8.000 especies) y los peces de agua dulce (aproximadamente 13.000 especies). La primera evaluación mundial de todos los anfibios (aproximadamente 6.000 especies) se completó en 2004.
La Lista Roja de Especies Amenazadas de la UICN™ constituye un esfuerzo conjunto de la UICN y de su Comisión de Supervivencia de Especies (www.iucn.org/themes/ssc), que trabajan con sus asociados para la Lista Roja: BirdLife International (http://www.birdlife.org/); el Centro de Ciencias Aplicadas a la Biodiversidad, de Conservación Internacional (http://www.conservation.org/); NatureServe (http://www.natureserve.org/); y la Sociedad Zoológica de Londres (http://www.zsl.org/).

Acerca de la Unión Mundial para la Naturaleza (UICN)
La Unión Mundial para la Naturaleza, fundada en 1948, agrupa a 84 Estados, 108 agencias gubernamentales, más de 800 ONG y a unos 10.000 científicos y expertos de 147 países en una asociación mundial única en su género. La misión de la Unión es influenciar, alentar y ayudar a las sociedades de todo el mundo a conservar la integridad y diversidad de la naturaleza y a asegurar que toda utilización de los recursos naturales sea equitativa y ecológicamente sostenible.
La Unión es la red más amplia del mundo en lo relativo al conocimiento sobre el medio ambiente y ha ayudado a más de 75 países a preparar e implementar estrategias nacionales para la conservación y la biodiversidad. La Unión es una organización multicultural y plurilinguística, con 1000 funcionarios en 62 países. Su sede mundial está en Gland, Suiza. http://www.iucn.org/
Acerca de la Comisión de Supervivencia de Especies (CSE) de la UICN y el Programa sobre las Especies
La Comisión de Supervivencia de Especies es la más grande de las seis Comisiones de la UICN integradas por voluntarios, con una membresía de 7000 expertos. La CSE asesora a la UICN y a sus miembros sobre una amplia gama de aspectos técnicos y científicos relativos a la conservación de las especies y su misión es la de garantizar el futuro de la biodiversidad. La CSE hace importantes contribuciones a los acuerdos internacionales que se ocupan de la conservación de la biodiversidad. www.iucn.org/themes/ssc/
El Programa de Especies apoya las actividades tanto de la Comisión de Supervivencia de Especies de la UICN como de Grupos Especialistas individuales, además de poner en práctica iniciativas sobre conservación de especies a escala mundial. El Programa es parte integral de la Secretaría de la UICN y se lo gestiona desde la sede de la Unión en Gland, Suiza. El Programa de Especies incluye una serie de unidades técnicas que se ocupan de Comercio y Utilización de Especies, la Lista Roja, Evaluaciones de la Biodiversidad de Agua Dulce (ubicadas todas en Cambridge, Reino Unido) y la Unidad de Evaluación de la Biodiversidad Mundial (ubicada en Washington DC, Estados Unidos).